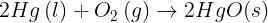Visualizzazione post con etichetta biochimica. Mostra tutti i post

mercoledì 23 marzo 2022

Metanogenesi e riscaldamento globale


La metanogenesi (produzione di metano) è un'antica via metabolica svolta esclusivamente da un gruppo di Archaea (archeobatteri) anaerobici noti come metanogeni. Gli studi geologici suggeriscono che i metanogeni si sono evoluti più di 2,5 miliardi di anni fa, prima che l'ossigeno diventasse abbondante nell'atmosfera terrestre. I metanogeni sono onnipresenti nei suoli, anche in ambienti desertici asciutti. Tuttavia, la loro attività, che produce poca energia, è limitata ad ambienti a bassa ossidoriduzione creati dall'esaurimento degli accettori di elettroni più energeticamente favorevoli. 

I tassi di produzione di metano nel suolo sono più alti quando i suoli sono saturi (poiché l'ossigeno si diffonde 10.000 volte più lentamente nell'acqua rispetto all'aria) o ricchi di materia organica labile che può alimentare la domanda biologica di ossigeno dalla respirazione eterotrofica. Ciò porta a condizioni anossiche e alle condizioni redox basse necessarie per la metanogenesi. Pertanto, a scala di ecosistema, la presenza persistente e la profondità della falda freatica controllano il volume del suolo in cui può verificarsi la produzione di metano. Tuttavia, anche in un suolo insaturo o povero di sostanza organica, le condizioni anossiche possono svilupparsi su una scala molto piccola (μm) in cui vivono i metanogeni. Questo spiega come la produzione di metano possa avvenire in suoli ricchi di ossigeno con un potenziale redox alto, anche se a tassi inferiori rispetto ai suoli anossici. 


La produzione di metano è sensibile a una serie complessa di fasi di decomposizione anaerobica, anche se i metanogeni stessi utilizzano solo il più semplice dei substrati. I substrati per la produzione di metano includono H2/CO2 (idrogenotrofico), in cui H2, formiato, alcol o CO sono usati come donatori di elettroni, cioè come riducenti; acetato (acetoclastico), dove viene ridotto il gruppo metile dell’acetato; e, più raramente, composti metilati (metilotrofici), in cui i metanogeni riducono anche il gruppo metilico da metanolo, dimetilsolfuro, mono-, di- e trimetilammine. I metanogeni nel suolo producono metano attraverso due vie principali: 


Sia l'acetato che l'idrogeno sono sottoprodotti della fermentazione anaerobica; quindi, la metanogenesi dipende da una catena alimentare complessa. La maggior parte dei detriti vegetali è costituita da polimeri scarsamente solubili, come cellulosa, lignina, lipidi e proteine. Questo materiale deve essere prima scomposto in unità solubili o monomeri, di solito da enzimi extracellulari, prima che possa essere metabolizzato dai microbi del suolo. I monomeri devono quindi essere fatti fermentare per produrre i substrati metanogenici, principalmente idrogeno e acetato. Le radici delle piante rilasciano anche composti di carbonio che i microbi possono decomporre anaerobicamente per produrre acetato. La produzione di metano dipende quindi dalla decomposizione anaerobica e dalla fermentazione per fornire i substrati, piuttosto che direttamente dalla quantità o dalla qualità della materia organica.

L'energetica della metanogenesi idrogenotrofica sembra in teoria essere relativamente favorevole, ma, in pratica, i tassi di crescita e le rese cellulari sono inferiori a quanto previsto da considerazioni termodinamiche. Ciò è in parte dovuto al fatto che la crescita autotrofica richiede l'uso di parte del substrato per l'assimilazione del C, inclusa una quantità significativa di ATP. L'energia della metanogenesi acetoclastica è meno favorevole di quella della metanogenesi idrogenotrofica, risultando in tassi di crescita ancora più lenti e rese cellulari inferiori. In generale, è stato anche riportato che l'aumento della salinità inibisce i metanogeni idrogenotrofici, ma migliora la metanogenesi acetoclastica.

In presenza di ioni nitrato o ioni solfato, i metanogeni sono superati dai batteri che respirano più accettori di elettroni che producono energia. Ad esempio, i riduttori di Fe(III) interferiscono con il metabolismo dei metanogeni competendo per il carbonio organico e sopprimono la metanogenesi poiché la riduzione di ferro produce più energia libera rispetto alla metanogenesi. Anche i batteri riduttori di solfato sono un gruppo che interagisce strettamente con i metanogeni nelle sacche anaerobiche dei sedimenti. L'interazione è competitiva per i substrati, e dipende dalla presenza di solfato e salinità dell'ambiente. La metanogenesi è influenzata da vari fattori ambientali e favorita da condizioni fortemente riduttive. Tuttavia, negli habitat anaerobici impoveriti di solfato, in particolare nei sedimenti d'acqua dolce e, a una certa profondità, nei sedimenti marini, i metanogeni svolgono un ruolo centrale come scavenger (spazzini) di H2 e nella mineralizzazione terminale dell'acetato. In quanto tali, contribuiscono in modo significativo al ciclo del carbonio. 

La metanogenesi eseguita dagli Archaea anaerobici rappresenta la più grande fonte biogenica di metano sulla Terra. Questo processo è una componente chiave del ciclo globale del carbonio e svolge un ruolo importante nei cambiamenti climatici, a causa dell'alto potenziale di riscaldamento del metano. 

I previsti aumenti della temperatura e le variazioni delle precipitazioni dovute al cambiamento climatico altereranno la produzione di metano nel suolo, il che potrebbe avere effetti di feedback sul cambiamento climatico. Tuttavia, questi feedback sono difficili da prevedere. I tassi di metanogenesi aumenteranno a temperature più elevate, come è generalmente vero per i processi microbici del suolo, ma l'entità dell'aumento è incerta. I climi più caldi potrebbero portare a stagioni di crescita più lunghe, aumentando la produttività delle piante e quindi maggiori emissioni di metano dovute all'aumento dell'apporto di materia organica. Inoltre, poiché la produzione di metano richiede condizioni anossiche, i cambiamenti nei modelli di precipitazione che alterano l'estensione della terra allagata cambierebbero notevolmente le emissioni di metano del suolo. L'essiccazione del suolo a causa della riduzione delle precipitazioni rallenterebbe la produzione di metano e aumenterebbe l'ossidazione aerobica del metano, riducendo così le emissioni. L'aumento dell'intensità e della frequenza delle precipitazioni già verificatesi in alcune regioni del mondo potrebbe invece aumentare l'estensione delle zone umide, aumentando così le emissioni globali di metano nell'atmosfera. 

Con lo scioglimento del permafrost (il suolo perennemente ghiacciato), anche l'estensione delle zone umide e la produzione di metano possono aumentare. Negli ultimi anni, gli scienziati del clima hanno avvertito che lo scongelamento del permafrost in Siberia e in Canada potrebbe essere una "bomba a orologeria a metano" che esplode lentamente. Il riscaldamento delle temperature nelle regioni artiche sta rilasciando enormi quantità di metano, solo parzialmente prodotto da metanogenesi recente in zone diventate umide, ma soprattutto quello fossile intrappolato negli antichi calcari. Oggi questi giacimenti metaniferi sono naturalmente sigillati verso l'alto dalle vaste estensioni di terreni congelati, impermeabili quindi ai gas. Nel territorio artico dell'emisfero boreale (dove sono la maggior parte di terre emerse del pianeta, e quindi esposte al congelamento e scongelamento), si teme la liberazione di grandi quantità di metano nell'atmosfera terrestre, che si aggiungerebbe agli altri gas che già favoriscono l'effetto serra, innescando così, in un circolo vizioso, un ulteriore aumento delle temperature medie terrestri.


venerdì 3 dicembre 2021

Di demoni, entropia, chimica e informazione

"Teaching thermal physics
is as easy as a song:
You think you make it simpler
when you make it slightly wrong."


(Mark Zemansky)


La Seconda legge della termodinamica e l’entropia - La prima definizione della seconda legge della termodinamica era stata formulata nel 1850 dal fisico tedesco Rudolph Clausius, il quale dimostrò l'impossibilità del passaggio spontaneo del calore da un corpo freddo a un corpo caldo. Nel 1865 Clausius introdusse il concetto di entropia, una proprietà termodinamica che prevede che alcuni processi spontanei siano irreversibili o impossibili. Per definirlo, si basò sulle interazioni tra le molecole di un gas, descritte da un modello puramente probabilistico delle loro collisioni. Osservando che il calore tendeva a indebolire il legame tra le particelle e ad accrescere le distanze medie tra di loro, introducendo questa nuova grandezza espresse il grado di dispersione delle molecole e quindi l'effetto del calore come tendenza ad aumentare il disordine. In questa ottica, è facile spiegare i passaggi di stato di una sostanza a pressione costante: all’aumento della temperatura, che è una misura macroscopica del moto delle particelle, cioè della loro energia cinetica, cresce il loro grado di libertà e i loro vincoli si allentano. Così un solido diventa un liquido e poi un gas.  


L’entropia S è perciò una proprietà fisica di un sistema termodinamico, correlata al suo grado di ordine. Una variazione dell’ordine è una variazione del numero di modi in cui possono essere disposte le particelle che costituiscono il sistema ed è un fattore determinante nella previsione della direzione in cui avviene una trasformazione spontanea. In generale, ogni processo spontaneo aumenta il grado di disordine del sistema, cioè tutti i sistemi tendono spontaneamente a un aumento del proprio disordine. Più formalmente, possiamo dire che la variazione di entropia ∆S di un sistema isolato durante un processo spontaneo è sempre maggiore o uguale a zero:


L'entropia predice la direzione dei processi spontanei e determina se sono irreversibili o impossibili, anche se obbediscono al requisito fondamentale di conservazione dell'energia come espresso nella prima legge della termodinamica (l'energia totale di un sistema isolato è costante; l'energia può essere trasformata da una forma all'altra, ma non può essere né creata né distrutta).


La seconda legge può essere formulata anche dicendo che l'entropia dei sistemi isolati lasciati all'evoluzione spontanea non può diminuire, in quanto essi giungono sempre ad uno stato di equilibrio termodinamico, dove l'entropia è massima. Se tutti i processi nel sistema sono reversibili, l'entropia è costante e la sua variazione è nulla. Un aumento dell'entropia spiega l'irreversibilità dei processi naturali macroscopici, spesso citata nel concetto di freccia del tempo (le leggi che governano lo scorrere del tempo in meccanica quantistica sono molto più complesse, e, la fisica quantistica ammette anche sovrapposizioni tra processi in cui il tempo può scorrere in avanti o all’indietro, per cui la freccia del tempo termodinamica diventa indefinita: con valori di entropia bassi, il tempo può procedere anche dal futuro al passato).


La prospettiva dell'entropia statistica fu introdotta nel 1870 dal fisico austriaco Ludwig Boltzmann, che stabilì un nuovo campo della fisica che forniva il collegamento descrittivo tra l'osservazione macroscopica della natura e la visione microscopica basata sul trattamento rigoroso di un grande insieme di microstati che costituiscono i sistemi termodinamici. Boltzmann definì l'entropia come una misura del numero di possibili stati microscopici (microstati) di un sistema in equilibrio termodinamico, coerente con le sue proprietà termodinamiche macroscopiche, che costituiscono il macrostato del sistema. Un'illustrazione utile è l'esempio di un campione di gas in un contenitore. I parametri facilmente misurabili volume, pressione e temperatura del gas descrivono la sua condizione macroscopica (stato). A livello microscopico, il gas è costituito da un grande numero di atomi o molecole in movimento libero, che si scontrano casualmente tra loro e con le pareti del contenitore (microstati). Le collisioni con le pareti producono la pressione macroscopica del gas, che illustra la connessione tra fenomeni microscopici e macroscopici.


Un microstato del sistema è una descrizione delle posizioni e dei momenti di tutte le sue particelle. Il gran numero di particelle del gas fornisce un numero infinito di possibili microstati per il campione, ma collettivamente esiste una configurazione media ben definita, che vediamo come macrostato del sistema, in cui ogni singolo contributo di microstato è trascurabile. L'insieme dei microstati comprende una distribuzione statistica di probabilità per ogni microstato, e il gruppo di configurazioni più probabili fornisce lo stato macroscopico. Pertanto, il sistema può essere descritto nel suo insieme solo da alcuni parametri macroscopici, chiamati variabili termodinamiche: l'energia totale E, il volume V, la pressione P, la temperatura T e così via. Tuttavia, questa descrizione è relativamente semplice solo quando il sistema è in uno stato di equilibrio.

L'equilibrio può essere illustrato con un semplice esempio di una goccia di colorante gettata in un bicchiere d'acqua. Il colorante si diffonde in modo complicato, difficile da prevedere con precisione. Tuttavia, dopo che è trascorso un tempo sufficiente, il sistema raggiunge un colore uniforme, uno stato molto più facile da descrivere e spiegare.


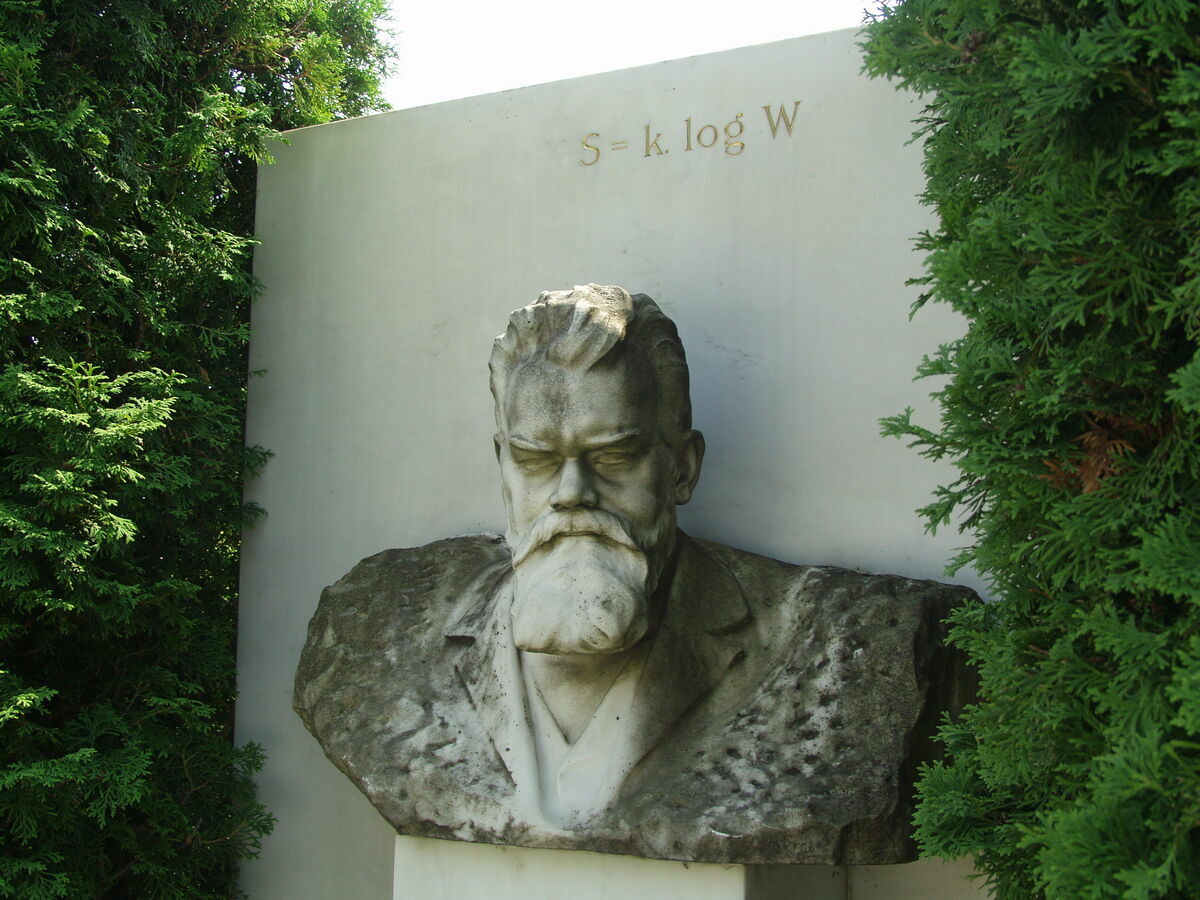
Nel 1873 Boltzmann formulò una semplice relazione tra l'entropia e il numero di possibili microstati di un sistema, che indicò con il simbolo W. L'entropia S è proporzionale al logaritmo naturale di questo numero:


dove:


k è la costante di Boltzmann, il fattore di proporzionalità che mette in relazione l'energia cinetica media delle particelle in un gas con la sua temperatura termodinamica. La costante di Boltzmann ha dimensioni di un'energia divisa per la temperatura assoluta, le stesse dell'entropia;


ln W è il logaritmo naturale di W, in cui W è la Wahrscheinlichkeit, la probabilità (termodinamica), cioè il numero di stati in cui il sistema può trovarsi. Più precisamente, W indica il numero di possibili microstati corrispondenti allo stato macroscopico di un sistema: il numero di "vie" (microscopiche, non osservabili) nello stato termodinamico (osservabile) di un sistema, che si può comprendere assegnando posizioni e momenti differenti alle varie particelle (atomi o molecole). Poiché W è un numero naturale (1,2, 3...), l’entropia vale zero o oppure è positiva (ln 1 = 0, ln W ≥ 0).


In pratica, l’equazione di Boltzmann (riprodotta anche sulla sua lapide funeraria) stabilisce un legame di proporzionalità tra l’entropia e la quantità di possibili interazioni dei componenti del sistema (che dipende dal loro numero, dal tipo delle loro relazioni, dalla loro energia, dalle dimensioni del sistema, ecc.). 


L'entropia di Boltzmann descrive il sistema quando tutti i microstati accessibili sono ugualmente probabili. È la configurazione corrispondente al massimo di entropia all'equilibrio. La casualità o il disordine sono massimi, così come la mancanza di distinzione (o informazione) di ogni microstato.


Disordine e reazioni chimiche - Possiamo affermare che in un sistema composto da oggetti differenti è molto più probabile realizzare uno stato disordinato anziché uno stato ordinato: tale probabilità, inoltre, aumenta con l’aumentare del numero degli oggetti che compongono il sistema. Prendiamo alcuni esempi dalla chimica:

Se, nel corso di una reazione, una molecola si scinde, dando luogo a molecole più piccole, aumenta il grado di disordine; nella decomposizione termica (endotermica) del tetrossido di diazoto (N2O4) si ottengono due molecole di diossido di azoto (NO2):


Naturalmente avviene il contrario nelle reazioni in cui molecole più piccole si combinano tra di loro per dare molecole più grandi, per cui aumenta l’ordine del sistema, ma la probabilità è contraria allo svolgersi della reazione: nella difficoltosa sintesi (endotermica) dell’ammoniaca (NH3) a partire da idrogeno (H2) e azoto (N2) si passa da un sistema con quattro molecole a uno, più ordinato ma meno probabile, con due: 


Se, in una reazione, a partire da reagenti allo stato solido oppure liquido, si formano prodotti tutti o in parte allo stato aeriforme, il grado di disordine aumenta: nella decomposizione termica di una molecola di carbonato di calcio (CaCO3) allo stato solido, si formano una molecola di ossido di calcio (CaO), solido, e una molecola di diossido di carbonio (CO2), allo stato gassoso, dando luogo a un sistema più disordinato:


Il fattore probabilistico è invece sfavorevole in una reazione in cui il numero di molecole allo stato gassoso diminuisce, per cui il sistema è più ordinato; ciò avviene ad esempio nella formazione di ossido di mercurio (HgO), allo stato solido, a partire da mercurio (Hg), liquido, e ossigeno (O2), gassoso:


Entropia e informazione - In altri termini, come vedremo, l’entropia dipende dall’informazione ricavabile dal sistema: in teoria dell'informazione, l'entropia di una variabile casuale è il livello medio di "informazione", "sorpresa" o "incertezza" inerente ai possibili esiti della variabile. Il concetto di entropia dell'informazione fu introdotto da Claude Shannon nel suo articolo del 1948 "A Mathematical Theory of Communication", ed è indicato anche come entropia di Shannon. Quando l'entropia è zero bit non c'è alcuna incertezza, nessuna libertà di scelta, nessuna informazione. Altri valori danno entropie diverse, tra zero e un bit. L’entropia dell'informazione di un sistema è, dato il macrostato, la quantità di informazione "mancante" necessaria per determinare un microstato. Secondo il fisico e statistico Edwin Thompson Jaynes (1957), l'entropia termodinamica, come spiegato dalla meccanica statistica, dovrebbe essere vista come un'applicazione della teoria dell'informazione. L'entropia termodinamica è interpretata come proporzionale alla quantità di ulteriori informazioni necessarie per definire il dettaglio dello stato  microscopico del sistema, che rimane non comunicato da una descrizione unicamente in termini di variabili macroscopiche della termodinamica classica, con la costante di proporzionalità che è proprio la costante di Boltzmann. 


Secondo Shannon, l'entropia H di una sorgente X è riferita all'informazione media contenuta in ogni messaggio emesso. Se la sorgente X è una variabile aleatoria discreta espressa con base di numerazione b (2 nel caso di codice binario), N il numero degli eventi, il valore atteso si riduce ad una media dell'informazione di ogni evento xi pesata con la propria probabilità P(xi):

il cui dominio è 0 ≤ H(X) ≤ logb N. Matematicamente H può anche essere vista come un'informazione media, perché quando un certo messaggio si verifica con probabilità P(xi), si otterrà la quantità di informazioni − logb P(xi) detta contenuto informativo o autoinformazione. 


Se si generalizza l'entropia termodinamica come fece il chimico americano J. Willard Gibbs, si vede chiaramente come essa sia simile all'entropia dell'informazione di Claude Shannon. L’entropia di Gibbs vale:


in cui kb è la costante di Boltzmann e la seconda parte del membro, adimensionale come il lnW di Boltzmann, è la sommatoria delle probabilità termodinamiche pi espresse in percentuale moltiplicata per il loro logaritmo naturale. Questa definizione rimane significativa anche quando il sistema è lontano dall'equilibrio. Se tutti i microstati sono equiprobabili, l'entropia termodinamica statistica si riduce alla forma data da Boltzmann.


È facile vedere l’equivalenza di forma delle due espressioni (anche se sono dimensionalmente disuguali: energia/temperatura assoluta contro unità di informazione). Più i microstati sono coerenti con il macrostato osservato, maggiore è l'entropia di Shannon e Gibbs. Il concetto si applica sia agli stati di non equilibrio che agli stati di equilibrio. Ne consegue ciò che affermò prima di Shannon il chimico Gilbert Lewis: "Guadagno di entropia significa sempre perdita di informazione, e niente di più". Lo stato di equilibrio è il macrostato a cui mancano più informazioni sui microstati sottostanti.


Il demone di Maxwell - Anche quando un sistema è completamente isolato dalle influenze esterne, il suo microstato è in continua evoluzione. Ad esempio, le particelle di un gas sono in continuo movimento, e quindi occupano una posizione diversa in ogni momento; anche i loro momenti cambiano continuamente mentre si scontrano tra loro o con le pareti del contenitore. Supponiamo di preparare artificialmente il sistema in uno stato di equilibrio altamente ordinato. Ad esempio, immaginiamo di dividere un contenitore con una partizione e posizionare un gas su un lato della partizione, con il vuoto sull'altro lato. Se rimuoviamo la partizione e osserviamo il successivo comportamento del gas, troveremo che il suo microstato si evolve secondo uno schema caotico e imprevedibile, e che in media questi microstati corrispondono a un macrostato più disordinato di prima. È possibile, ma estremamente improbabile, che le molecole di gas rimbalzino l'una sull'altra in modo tale da rimanere in una metà del contenitore. È estremamente probabile che il gas si diffonda per riempire uniformemente il contenitore, che è il nuovo macrostato di equilibrio del sistema.


Il demone di Maxwell è un esperimento mentale che ipoteticamente violerebbe la seconda legge della termodinamica. Fu proposto dal grande fisico scozzese James Clerk Maxwell in una lettera al collega Peter Guthrie Tait l'11 dicembre 1867. Apparve di nuovo in una lettera al fisico e chimico John William Strutt nel 1871, prima di essere presentato al pubblico nel libro di Maxwell del 1872 sulla termodinamica intitolato Theory of Heat (Teoria del calore). La sua descrizione dell'esperimento era la seguente:


“... se concepiamo un essere le cui facoltà sono così acute da poter seguire ogni molecola nel suo corso, un tale essere, i cui attributi sono essenzialmente finiti come i nostri, sarebbe in grado di fare ciò che è impossibile per noi. Infatti, abbiamo visto che le molecole in un recipiente pieno d'aria a temperatura uniforme si muovono con velocità per nulla uniformi, sebbene la velocità media di un gran numero di esse, scelte arbitrariamente, sia quasi esattamente uniforme. Supponiamo ora che un tale recipiente sia diviso in due porzioni, A e B, da una divisione in cui vi sia un piccolo foro, e che quell’essere, che può vedere le singole molecole, apra e chiuda questo foro, in modo da permettere solo alle molecole più veloci di passare da A a B, e solo alle molecole più lente di passare da B ad A. Egli così, senza dispendio di lavoro, aumenterà la temperatura di B e abbasserà quella di A, in contraddizione con la seconda legge di termodinamica”.


In altre parole, Maxwell immaginò un contenitore diviso in due parti, A e B. Entrambe le parti sono riempite con lo stesso gas a temperature uguali e poste l'una accanto all'altra. Osservando le molecole su entrambi i lati, un essere immaginario custodisce una botola tra le due parti. Quando una molecola di A più veloce della media si avvicina verso la botola, l’essere la apre e la molecola passerà da A a B. Allo stesso modo, quando una molecola di B più lenta della media si avvicina verso la botola, l’essere la fa passare da B ad A. La velocità media delle molecole in B sarà aumentata mentre in A avranno mediamente rallentato. Poiché la velocità molecolare media corrisponde alla temperatura, la temperatura diminuisce in A e aumenta in B. Poiché la temperatura cinetica di un gas dipende dalle velocità delle sue molecole costituenti, le azioni del demone fanno sì che una camera si riscaldi e l'altra si raffreddi. Ciò diminuirebbe l'entropia totale dei due gas, senza applicare alcun lavoro, violando così la seconda legge della termodinamica.


L’essere deve permettere alle molecole di passare in entrambe le direzioni per produrre solo una differenza di temperatura; il passaggio unidirezionale solo di molecole più veloci della media da A a B causerà lo sviluppo di temperatura e pressione più elevate sul lato B.

Nei suoi scritti, Maxwell descrisse l'entità che apre la porta tra le camere come un "essere finito". William Thomson (Lord Kelvin) fu il primo ad usare la parola "demone" per il concetto di Maxwell sulla rivista Nature nel 1874, intendendolo come un δαίμων (daimon) della mitologia greca, un essere soprannaturale a metà strada tra l’umano e il divino, non un essere malevolo nell’accezione cristiana. Fu da allora che l’essere senziente e acuto divenne un demone, quando non un diavoletto, come accade in Italia, travisando il senso originario del nome.


Il demone di Maxwell suscitò un forte dibattito nella filosofia della scienza e nella fisica teorica, che continua fino ai giorni nostri, stimolando il lavoro sulla relazione tra termodinamica e teoria dell'informazione. La maggior parte degli scienziati sostiene, su basi teoriche, che nessun dispositivo pratico può violare la seconda legge in questo modo. Altri ricercatori hanno realizzato esperimenti con forme del demone di Maxwell, anche se in una certa misura differiscono tutti dall'esperimento mentale e nessuno ha dimostrato di violare la seconda legge.


Diversi fisici hanno presentato calcoli che mostrano che, se si fa un'analisi più completa dell'intero sistema, compreso il demone, la seconda legge della termodinamica non sarà effettivamente violata. L'essenza dell'argomento fisico è mostrare che il demone genera più entropia scegliendo e spostando le molecole di quanta ne possa mai eliminare. Ci vorrebbe più lavoro termodinamico per misurare la velocità delle molecole e consentire loro di passare selettivamente attraverso l'apertura tra A e B rispetto alla quantità di energia guadagnata dalla differenza di temperatura.


Nel 1929 l’ungherese Leó Szilárd, e, negli anni ‘50, il francese Léon Brillouin, sottolinearono che un demone di Maxwell nella vita reale avrebbe bisogno di alcuni strumenti per misurare la velocità molecolare e che l'atto di acquisire informazioni richiederebbe un dispendio di energia. Poiché il demone e il gas interagiscono, dobbiamo considerare assieme l'entropia del gas e del demone. Il dispendio di energia da parte del demone provocherà un aumento dell'entropia del demone, che sarà maggiore dell'abbassamento dell'entropia nel gas.


Il fisico dell’IBM Rolf Landauer sollevò un’obiezione a questo argomento. Nel 1961 scoprì il principio che porta il suo nome, secondo cui, in qualsiasi operazione logicamente irreversibile che manipola l'informazione (come la cancellazione di un bit di memoria) l'entropia aumenta e una quantità associata di energia viene dissipata sotto forma di calore. Egli sapeva che alcuni processi di misurazione possono non aumentare l'entropia termodinamica perché sono termodinamicamente reversibili. Suggerì che queste misurazioni "reversibili" potrebbero essere utilizzate per ordinare le molecole, violando la seconda legge. Tuttavia, a causa della connessione tra l'entropia termodinamica e l'entropia dell'informazione, ciò significa anche che la misurazione registrata non deve essere cancellata. In altre parole, per determinare se far passare una molecola, il demone deve acquisire una informazione sullo stato della molecola e scartarla o conservarla. Scartare l’informazione porta all'immediato aumento dell'entropia, ma il demone non può conservarla a tempo indeterminato. Nel 1982, il fisico e teorico dell’informazione Charles Bennett dimostrò che, per quanto ben acuto, alla fine il demone finirà lo spazio di archiviazione delle informazioni e dovrà iniziare a cancellare le informazioni che ha raccolto in precedenza. La cancellazione delle informazioni è un processo termodinamicamente irreversibile che aumenta l'entropia di un sistema. Bennett giunse quindi alla stessa conclusione di Szilard, ma con argomentazioni diverse.


I filosofi della scienza dell’università di Pittsburg, John Earman e John D. Norton hanno sostenuto nel 1998-99 che le spiegazioni di Szilárd e Landauer del demone di Maxwell si basano sull’assunto che la seconda legge della termodinamica non può essere violata dal demone, e derivano ulteriori proprietà del demone da questa ipotesi, inclusa la necessità di consumare energia quando si cancellano informazioni, ecc. Invocare queste proprietà derivate per difendere la seconda legge dall'argomento del demone sarebbe quindi un ragionamento circolare:


“La strategia che dovrebbe essere perseguita dall'abile demone è aspettare uno stato improbabile. Se è consentito un sufficiente tempo di attesa, una violazione spontanea della Seconda Legge è (quasi) sicuro che si verificherà, senza bisogno di un demone per l'elaborazione delle informazioni; a maggior ragione, nulla del costo termodinamico della cancellazione di memoria può impedire la violazione. Forse allora l'obiettivo del gioco non è proteggere la Seconda Legge contro violazioni dirette, ma piuttosto proteggerla da violazioni abbellite, in cui il lavoro viene continuamente estratto da un sistema macroscopico. La nostra idea, per ripeterlo ancora una volta, è che tale protezione dalla violazione può essere offerta solo se il Demone è assimilato a un sistema termico canonico e che la prova non utilizza né beneficia di concetti teorici dell'informazione. E se il Demone non è così assimilato, allora dobbiamo ancora vedere una dimostrazione che deve fallire nei suoi sforzi per violare la Seconda Legge”.


Bennett, nel 2003, riconobbe la validità dell'argomentazione di Earman e Norton, pur sostenendo che il principio di Landauer ha ancora un notevole potere pedagogico ed esplicativo, specialmente nel contesto di altre idee influenti nella fisica del XIX e XX secolo.


Il dibattito sul demone di Maxwell continua, anche in campi apparentemente lontani dalla termodinamica e dalla fisica. Ad esempio, nel 2018, un neurologo di Harvard, Ya Wen, ha pubblicato un articolo chiedendosi se i mitocondri non siano il demone di Maxwell all'opera in natura. L'idea è che i mitocondri producano energia dall'elaborazione delle informazioni, o meglio, convertano le informazioni in energia: “I sistemi viventi utilizzano l'informazione e l'energia per mantenere uno stato altamente ordinato e un'entropia stabile. È possibile che il cambiamento dello stato dell'informazione possa influenzare lo stato dell'energia e viceversa. Lo squilibrio informazione-energia potrebbe essere la causa fondamentale delle malattie. Se consideriamo che l'informazione e l'energia sono due aspetti diversi della stessa cosa, allora dovrebbero essere intercambiabili. Pertanto, lo squilibrio informazione-energia potrebbe essere corretto. (…) I mitocondri ci forniscono un modello eccellente per conoscere la relazione tra informazione ed energia. Lo sviluppo della teoria della conversione informazione-energia aprirà una nuova era nella biologia: la biologia teorica che richiede il lavoro di squadra di biologi e fisici”.


In effetti, recenti applicazioni della teoria dell’informazione alla medicina e alla biologia hanno riconosciuto il possibile ruolo di strutture di memorizzazione delle informazioni non tradizionali, inclusi lipidi e gradienti ionici, nonché la trasmissione di informazioni tramite flusso molecolare attraverso le membrane cellulari. Rimangono molte sfide affascinanti, inclusa la definizione delle dinamiche di informazione intercellulare degli organismi multicellulari e il ruolo nelle malattie dell'archiviazione disordinata delle informazioni e del loro flusso.

giovedì 18 novembre 2021

Cent’anni di scienza e filosofia della vita


La vita è spesso definita in base a un elenco di proprietà che distinguono i sistemi viventi da quelli non viventi. Sebbene vi sia una certa sovrapposizione, questi elenchi sono spesso diversi, a seconda degli interessi degli autori. Edward Trifonov ha raccolto nel 2011 più di 120 definizioni di vita, cercando un denominatore comune, ma questo approccio non è sembrato scientifico a molti: ogni tentativo di definizione è legato a una teoria da cui deriva il suo significato e non può essere ottenuto da pratiche combinatorie. 


Gli esseri viventi condividono una serie di proprietà che non sono presenti contemporaneamente nella materia inanimata, sebbene si possano trovare esempi di materia che esibisce l'una o l’altra, ma mai insieme. Le entità viventi metabolizzano, cioè ricavano energia chimica dalla degradazione di sostanze nutritive ricche di energia, dall’ambiente o dall’energia solare; convertono le molecole nutritive nei precursori di base delle macromolecole cellulari; utilizzano questi precursori per formare altre sostanze organiche con diversa natura e funzioni; formano e degradano biomolecole necessarie a funzioni specializzate delle cellule. 


Inoltre, crescono, si riproducono, interagiscono con il loro ambiente, hanno strutture organizzate complesse, variabilità ereditabile e hanno discendenze che possono evolversi nel tempo, producendo strutture funzionali nuove che forniscono una maggiore capacità di adattamento in ambienti mutevoli. La riproduzione coinvolge non solo la replicazione degli acidi nucleici che trasportano l'informazione genetica, ma anche la costruzione epigenetica dell'organismo attraverso meccanismi di metilazione di acidi nucleici e proteine che non coinvolgono il genotipo. 


Ciò che è vivo ha strutture organizzate e complesse che svolgono queste funzioni, oltre a percepire e rispondere agli stati interni e all'ambiente esterno e impegnarsi nel movimento all'interno di quell'ambiente. Va ricordato che i fenomeni evolutivi sono un aspetto inestricabile dei sistemi viventi; ogni tentativo di definire la vita in assenza di questa prospettiva diacronica è vano. 


La scuola inglese


Il dibattito moderno sul rapporto tra materia e vita si sviluppò durante il periodo in cui i biochimici stavano cercando di definire il loro campo come una disciplina separata dalla chimica o dalla fisiologia, intorno al 1930.


Lo scienziato e divulgatore britannico John B. S. Haldane in The Sciences and Philosophy (1929) si oppose alla riduzione dei fenomeni biologici a spiegazioni meccanicistiche, poiché vedeva la struttura degli organismi biologici e la loro azione diversi da ciò che si vedeva nei sistemi fisici. Le leggi della chimica e della fisica non erano abbastanza solide per spiegare la biologia. “È la vita che stiamo studiando in biologia, e non fenomeni che possono essere rappresentati da concezioni causali della fisica e della chimica”.


Il biologo sperimentale e statistico medico Lancelot Hogben, nel libro The Nature of Living Matter (1930), lamentava il disinteresse di molti biologi del suo tempo per il ruolo dell’ambiente nello sviluppo degli organismi e sosteneva una visione riduzionista. Per Hogben, la natura della scienza è che le sue risposte sono sempre incomplete ed essa non ha gli stessi obiettivi della filosofia. Hogben non vedeva la necessità di abbandonare la metodologia riduzionista che la biochimica stava sviluppando. 


Per Joseph H. Woodger (Biological Principles: A Critical Study, 1929) la risoluzione doveva giungere dal riconoscimento dell'importanza primaria dell'organizzazione biologica e dei suoi livelli: “per cellula quindi intendo un certo tipo di organizzazione biologica, non un'entità concreta”. Woodger esortava ad abbandonare l'uso della parola "vita" nel discorso scientifico sulla base del fatto che "organismo vivente" era ciò che doveva essere spiegato. Per Woodger la domanda sul come è nata la vita è al di fuori della scienza.


Forse il luogo in cui il problema della natura della vita venne affrontato con maggiore insistenza fu il Dipartimento di Biochimica dell'Università di Cambridge. Durante la prima metà del ventesimo secolo, sotto la guida del biochimico Sir Frederick Gowland Hopkins, il dipartimento stabilì gran parte del quadro concettuale e della metodologia, oltre a formare molti dei più noti esponenti del settore. Hopkins credeva che, sebbene gli esseri viventi non disubbidiscano a nessuna legge fisica o chimica, essi le sostanziano in modi che richiedono la comprensione dei fenomeni biologici, dei vincoli e dell'organizzazione funzionale.


Nel suo importante discorso alla British Association for the Advancement of Science tenuto nel 1913, Hopkins respinse sia il riduzionismo dei chimici organici che cercavano di dedurre in vitro ciò che doveva accadere in vivo, sia il cripto-vitalismo di molti fisiologi che osservavano il protoplasma delle cellule viventi come vivo in sé stesso e irriducibile all'analisi chimica. Ciò che Hopkins offriva invece era una visione della cellula come una macchina chimica, obbediente alle leggi della termodinamica e della chimica fisica in generale, ma con strutture e funzioni molecolari organizzate. La cellula vivente “non è un grumo di materia composto da un gruppo di molecole simili, ma un sistema altamente differenziato: la cellula, nella moderna concezione della chimica fisica, è un sistema di fasi coesistenti di diversa natura”. Capire come si era realizzata l'organizzazione era tanto importante quanto sapere come si erano verificate le reazioni chimiche. Per Hopkins la vita è “una proprietà della cellula nel suo insieme, perché dipende dall'organizzazione dei processi”. Hopkins era influenzato dalla filosofia di Alfred North Whitehead sviluppata in Process and reality (1929), che sosteneva che la realtà consiste di processi piuttosto che di oggetti materiali, e che i processi sono meglio definiti dalle loro relazioni con altri processi, rifiutando così la teoria secondo cui la realtà è fondamentalmente costituita da pezzi di materia che esistono indipendentemente l'uno dall'altro.


Un membro del dipartimento di Cambridge, il biochimico, storico della scienza e più tardi grande sinologo Joseph Needham, si impegnò attivamente nel divulgare le idee di Hopkins nella comunità intellettuale scrivendo della base filosofica della biochimica in Science, Religion and Reality (1925). Needham seguì Hopkins nell'affermare che la questione cruciale non era più il rapporto tra sostanza vivente e non vivente, ma anche tra mente e corpo, e la biochimica doveva affidare alla filosofia e alle allora nascenti neuroscienze quest'ultima questione, affinché potesse concentrarsi sul conoscere la materia vivente. Un altro membro del dipartimento di biochimica, Norman Pirie, nel 1937 argomentò che essa non poteva essere adeguatamente definita da un elenco di qualità e nemmeno di processi, poiché la vita "non può essere definita in termini di una variabile". Per il programma del gruppo di Hopkins c’era la sfida di capire come leggi fisiche e chimiche piuttosto semplici possano produrre la complessità dei sistemi viventi.


Durante gli anni '30 un gruppo informale, noto come Biotheoretical Gathering, si riuniva a Cambridge e comprendeva diversi membri del dipartimento di biochimica e un certo numero di altri scienziati di Cambridge e filosofi. Questo gruppo aveva l'obiettivo di costruire una biologia teorica e filosofica transdisciplinare, che aiutasse a gettare le basi per l’affermazione della biologia molecolare. Il programma di ricerca di Hopkins era ben consolidato e fu collegato al lavoro del Biotheoretical Gathering, influenzando John B. S. Haldane, che diede importanti contributi alla teoria degli enzimi e alla creazione della moderna sintesi evolutiva, il neodarwinismo. Haldane avrebbe svolto un ruolo importante nello spostare la preoccupazione dalla natura della vita alla sua origine come soggetto di studio scientifico. Haldane sospettava, insieme a Pirie, che una definizione di vita pienamente soddisfacente fosse impossibile, ma affermava che la definizione materiale era un obiettivo ragionevole per la scienza. Vedeva la vita come “un modello di processi chimici. Questo modello ha proprietà speciali. Genera uno schema simile, come fa una fiamma, ma si regola come una fiamma non fa”. L'uso della metafora della fiamma per l'attività metabolica cellulare implicava un processo di non equilibrio in un sistema aperto in grado di riprodursi, ma anche, al limite della metafora, di autoregolazione. In ciò, Haldane rifletteva la preoccupazione di capire come la materia e le leggi fisiche potessero portare a fenomeni biologici.


Cos'è la vita? di Schrödinger


Nel 1943 il grande fisico Erwin Schrödinger (sì, quello dell'equazione della funzione d'onda e del paradosso del gatto) tenne una serie di conferenze al Dublin Institute for Advanced Studies, che furono pubblicate come What is Life? nel 1944. Questo piccolo libro ebbe un grande impatto sullo sviluppo della biologia del ventesimo secolo, specialmente sui fondatori della biologia molecolare. Schrödinger si chiedeva come fosse possibile che ci fosse un ordine duraturo nelle molecole responsabile dell'ereditarietà, quando era ben noto che gli insiemi statistici di molecole diventavano rapidamente disordinati (con un aumento dell'entropia come previsto dalla seconda legge della termodinamica). Il problema dell'ereditarietà fu quindi riformulato a livello molecolare con la domanda “Come l'ordine può dar luogo all'ordine?” L'altro argomento principale che interessava Schrödinger era la termodinamica degli esseri viventi in generale, ovvero “Come possono generare ordine dal disordine attraverso il loro metabolismo?” 


Fu la risposta alla prima domanda che catturò l'attenzione dei fondatori della nuova biologia. Schrödinger sosteneva che il materiale molecolare doveva essere un solido "aperiodico" che aveva incorporato nella sua struttura un "codice in miniatura". Le idee di “'cristallo aperiodico” e di “codice” non erano in realtà originali (il DNA era stato scoperto dallo svizzero Friedrich Miescher nel 1869, ma il suo ruolo nella riproduzione e la forma elicoidale erano ancora sconosciuti), ma insistevano sull'ipotesi di una logica molecolare della vita. Ciò voleva dire che la struttura degli atomi che comprendono la molecola dell’eredità non possedeva un singolo ordine periodico ripetitivo, ma avrebbe avuto piuttosto un ordine di livello superiore a causa della struttura delle sue subunità molecolari; era questo ordine di livello superiore, ma aperiodico, che avrebbe contenuto le informazioni codificate dell'ereditarietà. 


Nel 1952 l'esperimento di Alfred D. Hershey e Martha Chase provò definitivamente che il materiale genetico è costituito da DNA e non da proteine. Con la scoperta nel 1953 della struttura a doppia elica del DNA da parte di James D. Watson e Francis H.C. Crick, la specificità biologica fu ricondotta alla sequenza definita e unica dei nucleotidi che trasporta quella che da quel momento viene chiamata l'informazione genetica. 'Specificità' e 'informazione' vennero a coincidere e nel 1958 Crick affermava che "la specificità di un pezzo di acido nucleico è espressa solamente dalla sequenza delle sue basi, e [che tale] sequenza è un codice (semplice) per la sequenza di amminoacidi di una particolare proteina"; quindi "informazione significa determinazione precisa della sequenza, sia delle basi nell'acido nucleico sia dei residui amminoacidici della proteina".  Nello stesso anno, Crick definiva il “dogma centrale” della biologia molecolare, secondo cui il flusso dell'informazione genetica è monodirezionale: parte dagli acidi nucleici per arrivare alle proteine, senza considerare un percorso inverso.


La struttura a doppia elica del DNA proposta da Watson e Crick spiegava in che modo si replica il materiale ereditario, cioè come si trasmettono caratteristiche geneticamente determinate da una cellula all'altra e da una generazione all'altra. Inoltre, consentiva di ipotizzare e quindi stabilire che la sequenza delle basi del DNA contiene le informazioni, scritte in un codice particolare, per la sintesi delle proteine, e quindi per il funzionamento delle cellule di cui sono costituiti i tessuti e gli organismi. Gli studi sul codice genetico e la sintesi delle proteine trasformarono i fondamenti della biologia tra il 1955 e il 1965. La duplicazione del DNA implicava che potevano essere copiati anche i cambiamenti, dovuti a mutazioni spontanee o ad altri meccanismi che possono introdurre modificazioni nelle sequenze delle basi e quindi nelle istruzioni genetiche. Le mutazioni, come per esempio la sostituzione di una base con una diversa, possono determinare la creazione di nuove proteine, spesso non in grado di svolgere la normale funzione, minacciando la sopravvivenza dell'organismo. In alcuni rari casi, però, le nuove proteine potranno avere acquisito una caratteristica innovativa in grado di contribuire alla sopravvivenza e alla riproduzione dell'organismo. In pratica, la nuova visione molecolare della vita confermava il quadro esplicativo proposto dalla teoria sintetica dell'evoluzione.


La delucidazione della struttura del DNA e la maggior comprensione della genetica molecolare eclissò l'altra parte dell'argomentazione di Schrödinger, cioè che l'aspetto più importante del metabolismo è che esso rappresenta il modo della cellula di affrontare l'entropia che non può fare a meno di produrre mentre costruisce il suo ordine interno, ciò che Schrödinger definì "negentropia". Egli notò che la cellula deve mantenersi in uno stato lontano dall'equilibrio poiché l'equilibrio termodinamico è la definizione stessa di morte. Creando ordine e organizzazione all'interno di un sistema vivente (cellule, organismi o ecosistemi), le attività metaboliche devono produrre un maggiore disordine nell'ambiente, in modo che la seconda legge non venga violata. Legò le due nozioni, di ordine dall'ordine e ordine dal disordine, affermando che "il dono sorprendente di un organismo di concentrare un “flusso di ordine” verso se stesso e sfuggire così al decadimento nel caos atomico - di “bere ordine” da un ambiente adatto — sembra essere collegato alla presenza di “solidi aperiodici”, le molecole cromosomiche, che rappresentano senza dubbio il più alto grado di associazione atomica ben ordinata che conosciamo (molto più alto del normale cristallo periodico) in virtù del ruolo individuale che ogni atomo e ogni radicale sta giocando”. 


L’ordine che crea l’ordine


L'impatto del piccolo volume di Schrödinger su una generazione di fisici e chimici che furono attratti dalla biologia e che fondarono la biologia molecolare fu duraturo. La conoscenza delle basi proteiche e degli acidi nucleici dei sistemi viventi continua ad essere ottenuta a un ritmo accelerato, con il sequenziamento del genoma umano come punto di riferimento importante lungo il percorso che ha portato all’ingegneria genetica (tecnologia del DNA ricombinante).


In Il gene egoista (1976, 1989), l’etologo, biologo e divulgatore Richard Dawkins identificò nel gene, anziché nell'organismo individuale, il soggetto principale della selezione naturale che conduce il processo evolutivo. Dawkins, affermava che: “L'unità fondamentale della selezione, e quindi dell'egoismo, non è né la specie né il gruppo e neppure, in senso stretto, l'individuo, ma il gene, l'unità dell'ereditarietà”. Nel descrivere i geni come egoisti, l'autore non intendeva (come è inequivocabilmente dichiarato nel libro) implicare che sono guidati da motivi o volontà, ma semplicemente che i loro effetti possono essere accuratamente descritti come se lo fossero. Il mondo è diviso in replicatori, molecole stabili che, a differenza delle altre, hanno la capacità di replicarsi, che sono visti come il livello fondamentale di azione per la selezione naturale, e interattori, le molecole e le strutture codificate dai replicatori. Questi replicatori si diffusero nel “brodo primordiale”, popolando il mare. Il processo di replicazione non è però perfettamente fedele, in alcuni casi si creano delle copie sbagliate. L'errore di copiatura ha giocato un ruolo fondamentale nell'evoluzione della vita, poiché permise la propagazione di molecole diverse tra loro, alcune delle quali riuscivano a replicarsi meglio. La competizione fra queste molecole e le avversità ambientali selezionavano i replicatori più adatti, i quali perfezionarono le loro tecniche di propagazione. Alcuni di essi, ipotizzava Dawkins, potrebbero essersi evoluti in modo da potersi "nutrire" di altri replicatori, altri ancora potrebbero aver costruito una sorta di scudo di protezione dagli agenti esterni, dando vita alle prime forme di cellule primordiali. I replicatori di oggi sono i geni all'interno degli organismi viventi. In effetti, Dawkins relegava gli organismi allo stato di veicoli genici, o macchine di sopravvivenza.


Le idee di Dawkins suscitarono una reazione a quella che venne percepita come un'eccessiva enfasi sulla replicazione degli acidi nucleici. In particolare, i teorici dei sistemi di sviluppo hanno sostenuto un pluralismo causale nella biologia dello sviluppo e dell'evoluzione. La posizione di Dawkins fu fortemente contestata dagli americani Niles Eldredge, paleontologo, e Stephen Jay Gould, biologo, paleontologo e storico della scienza, estensori della teoria degli equilibri punteggiati. Tale teoria sostiene che i cambiamenti evolutivi avvengono in periodi di tempo relativamente brevi (su scala geologica) sotto l'impulso di forze selettive ambientali; questi periodi di variazione evolutiva sarebbero intervallati da lunghi periodi di stabilità. L'accesa e prolungata polemica di Gould contro Dawkins nasceva dalla sua opposizione al determinismo sotteso al suo pensiero, a favore dell'indeterminismo che, secondo Gould sta alla base della maggior parte dei processi biologici innovativi. Nella visione di Gould, come peraltro in quella già del francese Jacques Monod e di tutti i biologi evoluzionisti, il caso (serie di cause sconnesse o causalità intricata) produce il nuovo, mentre la necessità, attraverso la selezione naturale che opera in base a causalità lineare, conserva l'adatto ed elimina l'inadatto.  


Un altro oppositore di Dawkins fu il genetista Richard Lewontin, il quale sosteneva che, mentre il darwinismo tradizionale ha descritto l'organismo come soggetto passivo di influenze ambientali, sarebbe più corretto descrivere l'organismo come costruttore attivo del suo ambiente. Le nicchie ecologiche non sono ricettacoli precostituiti in cui gli organismi vengono inseriti, ma sono definite e create dagli organismi stessi. Il rapporto organismo-ambiente è dunque reciproco e dialettico. Lewontin è stato un critico tenace di alcuni temi del neodarwinismo; in particolare ha criticato coloro che, come anche Dawkins, tentavano di spiegare i comportamenti e le strutture sociali degli animali in termini di vantaggio o di strategia evoluzionistici; questo indirizzo di studio, secondo Lewontin, può essere considerato come una forma di determinismo genetico.


Il disordine che crea l’ordine


Meno noto è l'oltre mezzo secolo di lavoro ispirato dall'altro pilastro del discorso di Schrödinger, cioè come gli organismi ottengono ordine dal disordine attraverso la termodinamica di sistemi aperti lontani dall'equilibrio. Tra i primi studiosi di tale termodinamica di non equilibrio spicca il chimico e fisico Ilya Prigogine, noto soprattutto per la sua definizione di strutture dissipative e il loro ruolo nei sistemi termodinamici lontani dall'equilibrio, una scoperta che gli è valsa il Premio Nobel per la Chimica nel 1977. Una struttura dissipativa è un sistema termodinamicamente aperto che opera in uno stato lontano dall'equilibrio termodinamico, scambiando con l'ambiente energia, materia e/o entropia. I sistemi dissipativi sono caratterizzati dalla formazione spontanea di anisotropia, ossia di strutture ordinate e complesse, a volte caotiche. Questi sistemi, quando attraversati da flussi crescenti di energia, materia e informazione, possono anche evolvere e, passando attraverso fasi di instabilità, aumentare la complessità della propria struttura (ovvero l'ordine) diminuendo la propria entropia. In sintesi, Ilya Prigogine ha scoperto che l'importazione e la dissipazione di energia nei sistemi chimici potrebbe risultare nell'emergenza di nuove strutture (quindi strutture dissipative) dovute all'auto-organizzazione interna. In natura esistono organismi viventi in grado di auto-organizzarsi diminuendo la propria entropia a discapito dell'ambiente, vincolati a un maggior o minor disordine entropico. A partire da queste considerazioni, Prigogine e altri studiosi hanno cominciato a gettare un ponte tra la fisica, la chimica, l'ecologia e le scienze sociali, per studiare tali settori non separatamente, ma come sistemi tra loro interagenti. Per questa ragione Prigogine è considerato uno dei pionieri della scienza della complessità.


Il biofisico americano Harold Morowitz affrontò esplicitamente la questione del flusso energetico e della produzione dell'organizzazione biologica. L'ordine interno può essere prodotto da gradienti di flussi di materia/energia attraverso i sistemi viventi. Le strutture così prodotte aiutano non solo ad assorbire più energia attraverso il sistema, ad allungare il suo tempo di ritenzione nel sistema, ma anche a dissipare l'energia degradata nell'ambiente, pagando così il "debito di entropia" di Schrödinger. I sistemi viventi sono quindi visti come un esempio di un fenomeno più generale di strutture dissipative. “Una struttura dissipativa si rinnova continuamente e mantiene un particolare regime dinamico, una struttura spazio-temporale globalmente stabile”. Naturalmente, se si verificano fenomeni di auto-organizzazione dipende dalle effettive condizioni specifiche (iniziali e al limite) nonché dalle relazioni tra i componenti.


Considerare la cellula come una “struttura dissipativa” termodinamica non era una riduzione della cellula alla fisica, come sottolineò il fisico, biologo molecolare e storico della scienza britannico John Desmond Bernal, ma piuttosto implicava una fisica della "complessità organizzata" (in contrasto con l'ordine semplice o "complessità disorganizzata"). Lo sviluppo di questa “nuova” fisica dei sistemi aperti e delle strutture dissipative che sorgono in essi fu il compimento dello sviluppo che Schrödinger aveva previsto. Le strutture dissipative nei sistemi fisici, chimici e biologici sono fenomeni spiegati dalla termodinamica del non equilibrio. I modelli spazio-temporali emergenti e auto-organizzati sono visti anche nei sistemi biologici.


In effetti, i fenomeni di auto-organizzazione pervadono la biologia. Tali fenomeni sono visti non solo nelle cellule e negli organismi, ma anche negli ecosistemi, il che rafforza l'idea che sia necessaria una prospettiva sistemica più ampia come parte della nuova fisica. Importanti per tali fenomeni sono le dinamiche delle interazioni non lineari (dove le risposte di un sistema possono essere molto più grandi dello stimolo) e dei cicli autocatalitici (sequenze di reazioni chiuse su sé stesse e in cui è presente una maggiore quantità di uno o più materiali di partenza). realizzati attraverso i processi. Dato che i catalizzatori nei sistemi biologici sono codificati nei geni del DNA, un punto da cui iniziare a definire la vita è considerare i sistemi viventi come entità cicliche informate e autocatalitiche che si sviluppano ed evolvono sotto i doppi dettami della seconda legge della termodinamica e della selezione. Un tale approccio collega in modo non riduttivo i fenomeni dei sistemi viventi con le leggi fondamentali della fisica e della chimica. Il biologo americano Robert Rosen sosteneva che la complessità non è la vita in sé, ma ciò che definiva "l'habitat della vita": “L'organizzazione coinvolge intrinsecamente le funzioni e le loro interrelazioni”.


Origine (emergenza) della vita


Uno dei fenomeni emergenti più importanti è quello dell'origine della vita. Il biologo cellulare Franklin Harold lo ha definito come il problema scientifico più importante che oggi abbiamo di fronte. Il filosofo della scienza britannico Michael Ruse ha affermato che è essenziale inquadrare la ricerca sull'origine della vita nel darwinismo, poiché è una condizione necessaria per una definizione della vita scientificamente e filosoficamente adeguata, mentre  Robert Rosen ha sostenuto che la ragione per cui alla domanda "cos'è la vita?" è così difficile rispondere è che vogliamo in realtà sapere molto di più di quello che è, vogliamo sapere perché è: "Ci stiamo davvero chiedendo, in termini fisici, perché uno specifico sistema materiale è un organismo e non qualcos'altro". Per rispondere a questa domanda del perché dobbiamo capire come potrebbe essere sorta la vita, continuando un filone di ricerca che ha attraversato gran parte del ventesimo secolo.


Durante gli anni '20 del Novecento, Alexander Oparin e John B. S. Haldane hanno proposto indipendentemente le prime ipotesi moderne su come la vita potrebbe aver avuto origine sulla Terra. I presupposti chiave erano che le condizioni geofisiche sulla terra primitiva erano molto diverse da quelle presenti, e, cosa più importante, che non ci sarebbe stato ossigeno molecolare nell'atmosfera (l'ossigeno si è sviluppato molto più tardi con la comparsa di organismi fotosintetici). In questa atmosfera chimicamente riducente si sarebbe sviluppato un “brodo” di molecole organiche sempre più complesse, da cui potrebbero essere nati i precursori dei sistemi viventi. In effetti, questo tipo di approccio può essere definito una visione incentrata sul metabolismo.


Un momento importante fu la dimostrazione che alcuni amminoacidi potrebbero essere stati prodotti dall'azione di una scarica elettrica attraverso una miscela di gas ritenuti presenti nell'atmosfera primitiva. Si tratta del famoso esperimento di Stanley Miller e Harold Urey del 1953, che fu tuttavia contestato perché non dava conto del fatto che gli amminoacidi trovati costituivano una miscela di enantiomeri levogiri e destrogiri, mentre quelli delle proteine viventi sono solamente levogiri. L’esperienza fu in ogni caso considerata un altro possibile punto di partenza per lo sviluppo di sostanze costitutive degli esseri viventi, ovvero le proteine, che sono polimeri di amminoacidi formate in condizioni di alta temperatura. Questa visione di “prima le proteine” suggeriva che la chimica che porta alla vita potrebbe essersi verificata in un ambiente isolato, con una debole attività catalitica, che avrebbe facilitato la produzione degli altri componenti molecolari necessari.


Con la comprensione della struttura del DNA, l'attenzione si è spostata verso gli acidi nucleici, che potrebbero fungere da modelli per la propria replicazione. Sebbene Dawkins pensasse che un acido nucleico, formato per caso, sarebbe stato l'inizio della vita poiché si sarebbe "auto replicato", molti approcci per arrivare agli acidi nucleici implicano un ruolo per certe molecole abiotiche minerali di contribuire a formare strutture che fungono da modelli di ordinamento e persino come catalizzatori per la loro formazione. 


Gli sviluppi degli studi biochimici, genetico-molecolari e cellulari hanno confermato il ruolo fondamentale del DNA come macromolecola che registra e trasmette le informazioni specifiche, ma hanno anche mostrato che la vita non coincide con l'informazione contenuta nelle sequenze del DNA. La scoperta che l'RNA può svolgere funzioni catalitiche ha dimostrato che l'informazione genetica e il codice genetico sono nati successivamente nel mondo vivente, ossia costituiscono un modo “trovato” per riprodurre più efficacemente l'organizzazione biologica. Prima che il DNA diventasse la molecola che porta l'informazione genetica esisteva il mondo dell'RNA, che racchiudeva in sé entrambe le funzioni, di memoria e di catalizzatore di reazioni chimiche, che successivamente si sarebbero separate.
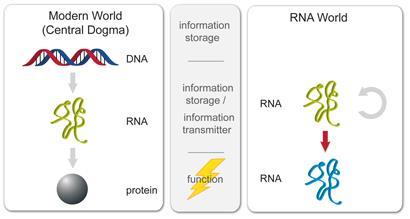


Gli acidi nucleici, d’altra parte, non devono le loro proprietà genetiche al fatto di essere polimeri o di potersi duplicare, bensì alla trama di relazioni tra le loro proprietà e determinate funzioni intracellulari che consente la riproduzione di queste funzioni. Anche per quanto riguarda i geni, è entrata progressivamente in crisi la visione tradizionale, che associava univocamente un gene a una data sequenza nucleotidica e quindi a una data funzione: molti geni ritenuti essenziali possono essere inattivati senza conseguenze, mentre per altri è possibile trovare nuove funzioni. Ciò non significa che il DNA conti poco, ma soltanto che il suo ruolo va compreso in un contesto evolutivo e funzionale.


Una visione alternativa, congeniale ad un approccio termodinamico e sistemico sottolinea la necessità della presenza dei principali fattori che distinguono le cellule dalle non cellule: metabolismo tramite cicli autocatalitici di polimeri catalitici, replicazione e un involucro fisico all'interno di una barriera chimica, come quella fornita dalla membrana cellulare. Questo potrebbe essere definito un approccio “prima la proto-cellula”. I vincoli chimici e le tendenze auto-organizzanti dei sistemi chimici complessi sarebbero stati critici nel determinare le proprietà dei primi esseri viventi. Con l'emergere delle prime entità che potrebbero essere chiamate viventi sarebbe nata la selezione biologica o naturale, in cui la casualità gioca un ruolo molto maggiore.